为什么切开双螺旋有生物学成本
正如图版 01(CRISPR)所讲,第一代基因编辑像一把分子剪刀:Cas9 酶切开 DNA 的两条链,细胞在匆忙修复伤口时产生微小的插入或缺失,从而把致病基因废掉。在已获批的体外疗法(如 Casgevy)中,这一刀改写了镰状细胞病患者的命运。
但切开双螺旋总有代价。DNA 双链断裂可能引发大片段缺失、染色体易位或激活 p53 损伤警报,尤其是同时切割多个位点时风险更高。而且一旦把基因组里的字母删掉,就没有撤销键。
这催生了另一条思路:既然人体原本就靠DNA 甲基化在每个组织里关掉成千上万个基因,我们能不能派一个临时信使,把同样的一把化学锁精准挂在某一个过度活跃的致病基因上,完全不碰底层的序列?
编辑器只留几天,沉默却持续一年
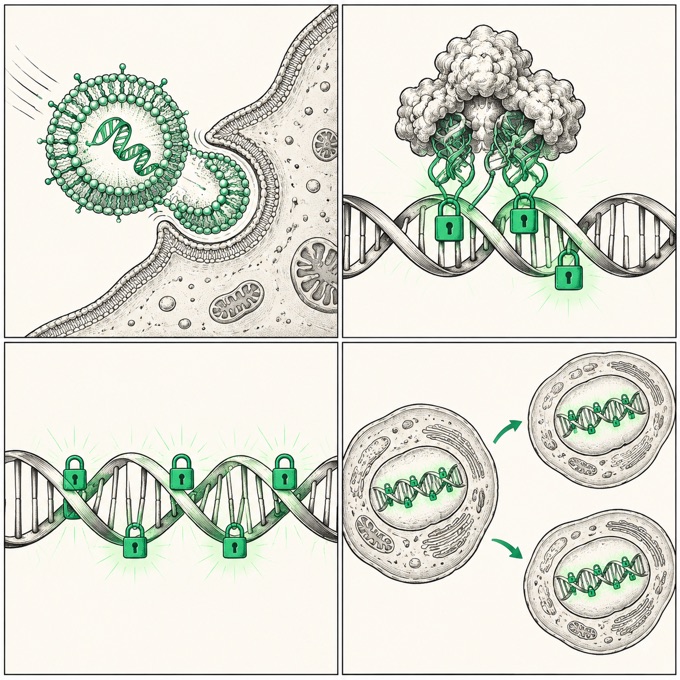
表观遗传编辑过去十年的死穴是持久性:如果为了安全把编辑器做成信使 RNA(mRNA)送进体内,蛋白质几天就代谢掉了;早期设计往往是编辑器一走,基因又重新开启。
2021 年,Jonathan Weissman 与 Luke Gilbert 团队在 Cell 发表 CRISPRoff,证明将三个表观遗传效应结构域(DNMT3A、DNMT3L 与 KRAB)连接在失去切割活性的死 Cas9(dCas9)上,写下的甲基化记忆在体外能跨越 450 次以上细胞分裂,即便诱导多能干细胞分化成神经元也依然保持关闭。
真正的活体动物验证在 2024 年 2 月登上 Nature。米兰圣拉斐尔テレ顿基因治疗研究所的 Angelo Lombardo 与 Martino Alfredo Cappelluti 团队采用锌指蛋白(zinc-finger)作为 DNA 结合底座,构建出一体化的进化版工程转录抑制因子(EvoETR),靶向小鼠肝脏中控制低密度脂蛋白胆固醇(LDL-C)的 Pcsk9 基因。
单次静脉注射包裹编辑器 mRNA 的脂质纳米颗粒(LNP),就将小鼠血液中的 PCSK9 蛋白水平压低约一半并维持近一年(330 天);而优化后的 EvoETR 架构实现了最高约 75% 的持久压制且脱靶率极低。为了验证这种沉默能否在活体器官分裂时遗传,研究团队对小鼠实施了部分肝切除术以迫使肝脏再生:新生出来的子代肝细胞完整复制了启动子上的 CpG 甲基化锁,继续保持 Pcsk9 关闭。
切断、换字、改写,还是加锁
今天实验台上有四种可编程工具,各自干不同的活:如果患者是因为某个字母写错造出了毒性蛋白,碱基编辑或先导编辑负责把错字改对;如果临床目标只是把一个产量过高的正常基因调低或关掉(如高胆固醇血症里的 PCSK9 或肝癌里的 MYC 原癌基因),表观遗传沉默能在完全不切伤 DNA 骨架的前提下完成任务。
| 技术路径 | 是否切开 DNA 链? | 是否改变 A-T-G-C 字母? | 是否可逆? | 监管状态 (2026 年 10 月) |
|---|---|---|---|---|
| CRISPR-Cas9 核酸酶 | 是,产生双链断裂 (DSB) | 是 (修复时产生插入或缺失) | 否 (序列永久改变) | 1 款体外疗法获批 (Casgevy, 2023);体内疗法 BLA 已受理 (lonvo-z, PDUFA 2027-03) |
| 碱基编辑 (Base editing) | 单链切口 (nickase) | 是 (单个碱基转换:C 变 T 或 A 变 G) | 仅能通过再次编辑改回 | 1/2 期人体临床试验中 (如针对 PCSK9 的 VERVE-101/102);0 款获批 |
| 先导编辑 (Prime editing) | 单链切口 (nickase) | 是 (逆转录酶写入短片段) | 临床上不可逆 | 早期 1 期临床试验中;0 款获批 |
| 表观遗传沉默 (EvoETR / CRISPRoff) | 否 (0 次切割) | 否 (0 个字母改变) | 是 (可用 TET1 靶向去甲基化解锁) | 1/2 期人体临床 (靶向 MYC 的 OTX-2002, NCT05497453);PCSK9 处于临床前 |
Clinical Epigenetics 2026 年发表的定量综述总结了 2024 至 2026 年间把表观遗传编辑推向临床转化的三条硬指标:机制持久性(在无持续编辑器表达下,体外维持至少 450 次细胞分裂、体内维持至少 12 个月)、组织递送效率(借助工程化脂质纳米颗粒与 AAV 载体在肝脏、肌肉与全脑实现超过 50% 的转导效率),以及由 OTX-2002(针对肝细胞癌 MYC 的 MYCHELANGELO 1/2 期研究,NCT05497453)领衔的首批人体临床试验。